高糖度の作物をつくりたい。
そう考えると、まず思いつくのは「糖をたくさん合成させる」ことではないでしょうか。ショ糖を合成する酵素の働きを強くすれば、最終的に糖も増える。直感的には分かりやすい考え方です。
ところが、2026年9月1日に Frontiers in Plant Science に発表されたテンサイ(Beta vulgaris)の研究では、かなり逆説的な結果が得られました。
糖度の低い系統の方が、ショ糖合成に関わる遺伝子をむしろ強く発現していたのです。
では、高糖度の系統は何が違ったのでしょうか。
答えとして浮かび上がってきたのは、「糖をたくさんつくる」能力よりも、成熟期に糖を成長や呼吸へ使わなくなるという炭素配分の違いでした。
Baiらは、糖度と根収量の異なる2系統を、出芽後約83、103、123、143、163日の5つの生育段階でサンプリングし、トランスクリプトームとメタボロームを重ね合わせています。
ただし、この論文をさらに一歩踏み込んで読むと、もう一つ興味深いことが見えてきます。
論文では「収量と糖度のtrade-off」が中心テーマになっていますが、実際に1ヘクタールから得られるショ糖量まで単純計算すると、その構図は少し変わるのです。
- 31系統から選ばれた「高糖」と「高収量」
- Figure 6だけを見ると、この研究のストーリーがかなり分かる
- 高糖系統なのに、ショ糖合成遺伝子は強くない
- Dは糖を「成長に使い続ける」
- 高糖度とは「糖をつくる能力」ではなく「糖を使わなくなる能力」なのか
- ただし、「fluxが下がった」とまではまだ証明されていない
- そして、収量を実際に計算してみる
- 2年間平均で計算すると、Kはさらに上に見える
- それなら高糖系統Kの方が産業的にも優秀なのか?
- 「成長すると糖が減る」という話自体は新しくない
- 今回の新しさは、「時間軸 × 2系統 × 2種類のオミクス」
- ただし「代謝を止めれば糖が増える」と単純化するのも危険
- 既知の重要因子BvTST2.1を測っていない
- 「5つの転写因子を発見」はまだ言い過ぎ
- metabolomicsにも少し注意が必要
- 本当に狙うべきは「代謝を落とす遺伝子」ではなく、切り替えのタイミングかもしれない
- 「高糖」と「高収量」は本当に両立できないのか
- まとめ
- 原著論文
- 関連研究
31系統から選ばれた「高糖」と「高収量」
研究に使われたのは、S72-8とDR41Kという2つの近交系です。論文中ではS72-8がK、DR41KがDと表記されています。
研究チームはまず31系統を2023年と2024年の2年間にわたって栽培しました。S72-8は糖度が高く、2年間平均15.50%。一方のDR41Kは12.45%でした。根収量の2年間平均は、S72-8が91.0 t/ha、DR41Kが97.2 t/haでした。
オミクス解析を行った2024年の試験では、差がさらに明瞭になりました。
| 2024年 | 高糖系統 S72-8(K) | 高収量系統 DR41K(D) |
|---|---|---|
| 根収量 | 116.7 t/ha | 137.5 t/ha |
| 糖度 | 17.99% | 14.84% |
| 根収量 × 糖度※ | 約21.0 t/ha | 約20.4 t/ha |
※根収量とpolarimetryで測定された糖度を単純に掛けた概算。工場で実際に回収できる白糖収量ではありません。
根だけを見ればDの方が多くとれます。一方、糖度はKが高い。著者らはこの対照性を利用して、高糖・低収量のKと、低糖・高収量のDとして解析を進めました。
Figure 6だけを見ると、この研究のストーリーがかなり分かる
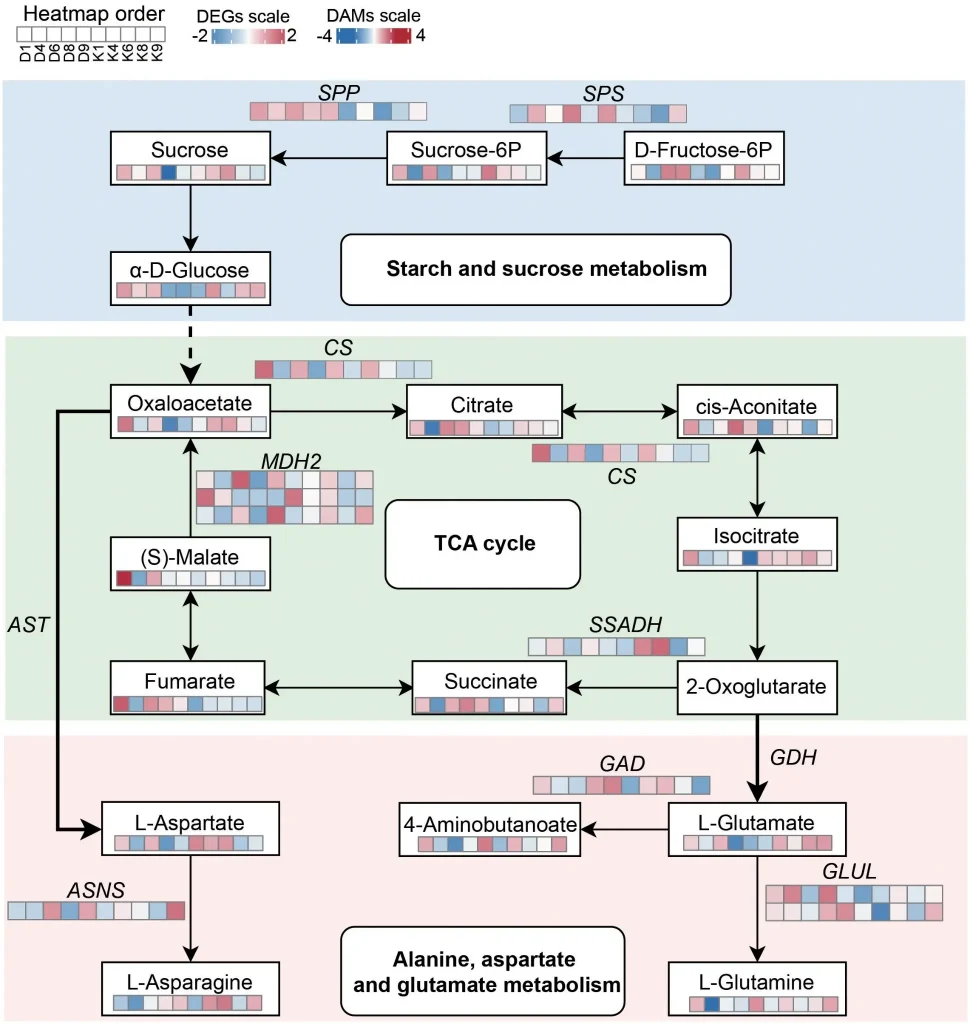
原著のFigure 6は、この研究で最も分かりやすい図です。
上から、ショ糖代謝 → TCA回路 → アミノ酸・窒素代謝という炭素の流れを一枚にまとめています。
各小さなマスは、左からD系統の5つの生育段階、続いてK系統の5つの生育段階です。遺伝子発現量や代謝物量が相対的に高いほど赤、低いほど青になっています。
細かな遺伝子名をすべて覚える必要はありません。
この図で見るべきなのは、入ってきた炭素を「糖として残す」のか、それとも「代謝して成長に使う」のかという違いです。
高糖系統なのに、ショ糖合成遺伝子は強くない
最も意外なのが図の一番上です。
ショ糖合成に関わる代表的な酵素として、SPS(sucrose-phosphate synthase)とSPP(sucrose-phosphate phosphatase)があります。
ところがSPPは、高糖度のKではなく低糖度のDで一貫して高発現していました。
DではSPPのFPKMが28.73〜34.09で比較的高く安定していたのに対し、Kでは6.50〜24.76でした。SPSについてもDで中後期に高い発現が見られています。
つまり、
高糖度=ショ糖合成系をずっと強く動かしている
という単純な説明ではありません。
むしろ糖度の低いDの方が、ショ糖をつくる仕組み自体は活発に見える。
では、その糖はどこへ行くのでしょうか。
Dは糖を「成長に使い続ける」
Figure 6の中央にあるのがTCA回路です。
糖を呼吸によって利用し、ATPを得たり、さまざまな生合成に必要な炭素骨格を供給したりする、細胞の中心的な代謝回路です。
Dでは、CS、ACLY、MDH2などの関連遺伝子が高く発現していました。
さらに図の下側では、GLULやGADなど窒素・アミノ酸代謝に関わる遺伝子もDで高い傾向を示しています。クエン酸、リンゴ酸、グルタミンなどの代謝物量も、D側で高い時期がみられました。
かなり単純化すると、Dでは、
糖 → 呼吸・TCA回路 → 炭素骨格・アミノ酸 → 根の成長
という方向への炭素利用が成熟期まで比較的強く残っています。
対してKでは、成熟するにつれてこうした一次代謝系が相対的に弱くなります。
大づかみに言えば、
Dは「まだ育っている根」 Kは「育つより貯めることを優先した根」
という違いです。
高糖度とは「糖をつくる能力」ではなく「糖を使わなくなる能力」なのか
ここが今回の研究の中心です。
Kはショ糖合成酵素を圧倒的に強くしたわけではありません。
その代わり、成熟段階になるとTCA回路や窒素同化など、成長のために炭素を消費する経路が相対的に弱くなっています。
結果として、輸送されてきたショ糖が成長側へ引き抜かれにくくなり、貯蔵側に残りやすくなる。
したがって今回の研究から見えてくる高糖度化のイメージは、
「蛇口をもっと開く」より「排水口を絞る」
に近いものです。
これは植物のsource–sink関係を考える上でも興味深い結果です。
ただし、「fluxが下がった」とまではまだ証明されていない
ここは原著と少し距離を取って読む必要があります。
論文中ではしばしば「carbon flux」「metabolic flux」という言葉が使われ、DではTCA回路へのfluxが高く、Kでは低いという解釈が示されています。
しかし今回測定した中心データは、RNA量と、各時点に存在していた代謝物量です。
^13C標識などを使って炭素が単位時間あたりどれだけ流れたかを測定するmetabolic flux analysisではありません。呼吸速度やCS、MDHなどの酵素活性も直接測定していません。
したがって、
「DではTCA fluxが高いことを実証した」
よりも、
「DではTCA回路や窒素代謝への炭素利用が高いことと整合する遺伝子発現・代謝物パターンが得られた」
と表現する方が正確です。
この差は小さく見えますが、機構論としては重要です。
そして、収量を実際に計算してみる
ここからは原著には書かれていない部分です。
論文ではS72-8を「high-sugar/low-yield」、DR41Kを「low-sugar/high-yield」と呼んでいます。
確かに根収量では、137.5 t/ha > 116.7 t/haなのでDの方が上です。
しかしテンサイは根そのものを生産することが最終目的ではなく、主目的はその中のショ糖です。
そこで単純に、根収量 × 糖度を計算すると、
S72-8: 116.7 × 0.1799 = 20.99 t/ha
DR41K: 137.5 × 0.1484 = 20.41 t/ha
になります。
驚くことに、高糖・低収量とされたKの方が約2.9%多い。
少なくともこの単純計算だけを見る限り、
「糖度を上げた代償としてショ糖生産量が落ちた」
とは言えません。
起きているのは、まず根の量と糖濃度のtrade-offです。
それがそのまま、単位面積あたり糖生産量のtrade-offを意味するわけではありません。
2年間平均で計算すると、Kはさらに上に見える
31系統を比較した2023–2024年の平均値でも同じ概算ができます。
S72-8: 91.0 t/ha × 15.50% = 14.11 t/ha
DR41K: 97.2 t/ha × 12.45% = 12.10 t/ha
単純積ではKが約16.6%上になります。
ただし、これは各形質の2年間平均値同士を掛けたこちら側の概算です。各plotについてsugar yieldを算出して統計解析したものではありません。
したがって、「S72-8の糖収量が統計的に有意に高い」とまでは言えません。
それでも、「低収量」というラベルだけを見ていると見落としやすい重要な点です。
それなら高糖系統Kの方が産業的にも優秀なのか?
そこまでは言えません。
テンサイでは、根の中に何%ショ糖が含まれるかだけで工場から得られる白糖量は決まりません。
カリウム、ナトリウム、α-amino nitrogenなどの非糖成分が多いと、ショ糖がモラセス側に残り、回収効率が低下します。
実際の品質評価では、根収量と回収可能な白糖含量を組み合わせてwhite sugar yieldを評価します。
今回の2026年論文では、これらの加工品質指標は測定されていません。
したがって先ほどの21.0 t/haと20.4 t/haは、理論上含まれているショ糖の粗い量であって、工場で回収できるwhite sugar yieldではないという点には注意が必要です。
逆に言えば、ここまで測ればこの2系統の「本当の産業的trade-off」が分かるはずです。
「成長すると糖が減る」という話自体は新しくない
この論文を新規性の観点から見ることも重要です。
2017年にはすでに、高収量・低糖型と高糖型のテンサイを時系列で比較したtranscriptome研究が報告されています。その研究でも、高収量型では根の成長が速く、糖度が低い理由として、根の成長による希釈と、成長のためのショ糖消費が議論されていました。
2020年にはJammerらが、テンサイ根の発達をprestorage、transition、secondary growth/sucrose accumulationという生理的段階として解析し、糖利用と貯蔵が発達とともに切り替わることを酵素活性も含めて示しています。
さらに2015年には、ショ糖を液胞へ取り込む主要なtonoplast sugar transporter BvTST2.1 が同定されています。
つまり、「成長と糖蓄積が競合する」こと自体が2026年に初めて発見されたわけではありません。
今回の新しさは、「時間軸 × 2系統 × 2種類のオミクス」
では何が進んだのでしょうか。
今回の研究では、2系統について5つの生育段階を追い、30のRNA-seqライブラリを解析しています。さらに同じ発達過程をmetabolomicsで追い、568代謝物を検出しました。
その結果、高糖系統では成熟につれて成長側の一次代謝が弱くなるという、transcriptとmetaboliteの双方で整合するパターンを示せた。
ここが今回の研究の強い部分です。
単に「この遺伝子が高かった」という話ではなく、植物が成長中心のsinkから貯蔵中心のsinkへどう切り替わるかを時間軸で捉えた研究として読むと価値が見えてきます。
ただし「代謝を止めれば糖が増える」と単純化するのも危険
Kで起きていることを、「代謝を止めたから糖が増えた」と表現するのは強すぎます。
過去のテンサイ研究では、ショ糖蓄積期にも糖代謝酵素は活動しており、sinkとして機能するための代謝は残っています。
したがって今回の結果は、代謝の全面停止というより、成長に向かう一次代謝への炭素配分を相対的に抑え、貯蔵へ比重を移したと考える方がよさそうです。
既知の重要因子BvTST2.1を測っていない
今回の研究には、もう一つ大きな空白があります。
テンサイではBvTST2.1というtonoplast sugar transporterが、細胞質から液胞へショ糖を濃縮する主要因子として知られています。
ところが今回、この2系統間でBvTST2.1の発現量や輸送活性は直接比較されていません。著者自身もDiscussionでこの点をlimitationsとして挙げています。Trehalose-6-phosphateなどの糖シグナル系についても未解析です。
したがって実際のKでは、
炭素消費↓
だけでなく、
液胞へのショ糖輸送↑
も同時に起きている可能性があります。
今回の研究だけでは区別できません。
「5つの転写因子を発見」はまだ言い過ぎ
WGCNAでは高糖系統に関連するmoduleから、AP2、bHLH78、REM16、SRS3、TIFY4bという5つの転写因子がhubとして抽出されました。
興味深い候補ではあります。
しかしWGCNAで分かるのは共発現関係です。
ノックアウトも過剰発現も行われておらず、どの遺伝子を直接制御するのかも分かっていません。qRT-PCRでRNA-seqとの整合性は確認されていますが、それは転写因子の機能実証ではありません。
したがって現段階では、「高糖化を制御する候補スイッチ」くらいが適切でしょう。
metabolomicsにも少し注意が必要
代謝物については568種類を測定していますが、DAMの判定条件はVIP ≥ 1かつt-test p < 0.05です。
RNA-seqのDEGではFDR補正が行われていますが、metaboliteのDAM判定について本文にはmultiple testing correctionが明示されていません。
さらに、著者が高糖Kの特徴として議論するsucroseとtrehalose自体は、全生育段階で一貫してDAM基準を満たしているわけではありません。Raffinoseとgalactinolは特定の段階で差が出ています。
もちろん最終収穫時の糖度そのものはpolarimetryで明確な差があります。
したがってこのmetabolomicsは、特定の1代謝物を決定打として読むよりも、TCA中間体やアミノ酸を含む経路全体で方向性がそろっていることを評価するのがよいでしょう。
本当に狙うべきは「代謝を落とす遺伝子」ではなく、切り替えのタイミングかもしれない
この論文から育種やゲノム編集を考えるなら、単純にCSやMDHなどのTCA回路を弱くすればよい、とは考えない方がよいでしょう。
根を大きくする初期・中期には、細胞分裂、細胞伸長、維管束形成、窒素同化のためにエネルギーと炭素骨格が必要です。
そこで一次代謝を最初から抑えれば、そもそも十分なstorage organを作れない可能性があります。
狙うべきなのはむしろ、
前半はしっかり成長する。 十分な根量を確保した後で、炭素利用を成長から貯蔵へ切り替える。
という発達段階依存の制御なのかもしれません。
そう考えると、今回WGCNAで見つかった転写因子群も、「糖を直接つくる遺伝子」ではなく、growth-to-storage transitionのタイミングを変える制御因子候補として見る方が面白くなります。
「高糖」と「高収量」は本当に両立できないのか
テンサイで根収量と糖度が負に相関すること自体は古くから知られています。
しかし今回の2系統を見る限り、少なくとも「根収量」と「糖度」を別々に評価するだけでは不十分です。
最終的に重要なのは、1 haで何トンの回収可能な砂糖を得られるのかです。
今回の高糖Kは、根収量ではDに負けました。しかし糖度を掛け合わせた理論ショ糖量では負けていません。
さらにもし、成熟後の代謝切り替え時期だけを少し遅らせ、Dの根量とKの糖蓄積戦略を部分的に組み合わせることができればどうなるか。
今回の研究の本当の面白さは、そこにあります。
まとめ
今回の研究を、「テンサイの高糖度を決める5つの遺伝子を発見した研究」として読むと、やや弱い論文です。
機能実証はまだなく、carbon fluxも直接測定されていません。
一方、「植物は、つくった炭素をいつまで成長に使い、いつから貯蔵へ回すのか」という研究として読むと非常に興味深い。
高糖度系統では、糖合成能力そのものが突出しているわけではありませんでした。
むしろ成熟期になると、TCA回路や窒素代謝など成長に関わる炭素消費が相対的に弱くなり、糖を貯蔵側へ残す方向へ移行していました。
そして原著の数字をもう一段計算してみると、「低収量」とされた高糖系統が、単位面積あたりの理論ショ糖量では必ずしも低くないことも分かります。
高糖度を目指すということは、単純に糖合成を強くすることではないのかもしれません。
植物にとって重要なのは、どれだけ炭素をつくるかではなく、いつ、何に使うのをやめるか。
今回のテンサイは、その問題をかなり分かりやすい形で見せてくれています。
原著論文
Bai X. et al. (2026). Integrated transcriptomic and metabolomic analyses reveal the molecular mechanisms of sugar accumulation and yield trade-off in sugar beet. Frontiers in Plant Science 17:1874591. DOI: https://doi.org/10.3389/fpls.2026.1874591
原著はCC BY 4.0で公開されています。本文中のFigure 6は原著の図を出典・ライセンスを明記して再掲しています。
関連研究
- Bellin D. et al. (2017). The sugar beet high-yielding genotype has a different transcriptional response to sugar accumulation than the high-sugar genotype. PLOS ONE. https://doi.org/10.1371/journal.pone.0175454
- Jammer A. et al. (2020). Enzymes of sucrose metabolism and their regulation in sugar beet root development. Plant Direct. https://doi.org/10.1002/pld3.221
- Jung B. et al. (2015). Identification of the transporter responsible for sucrose accumulation in sugar beet taproots. Nature Plants 1:14001. https://doi.org/10.1038/nplants.2014.1
コメント