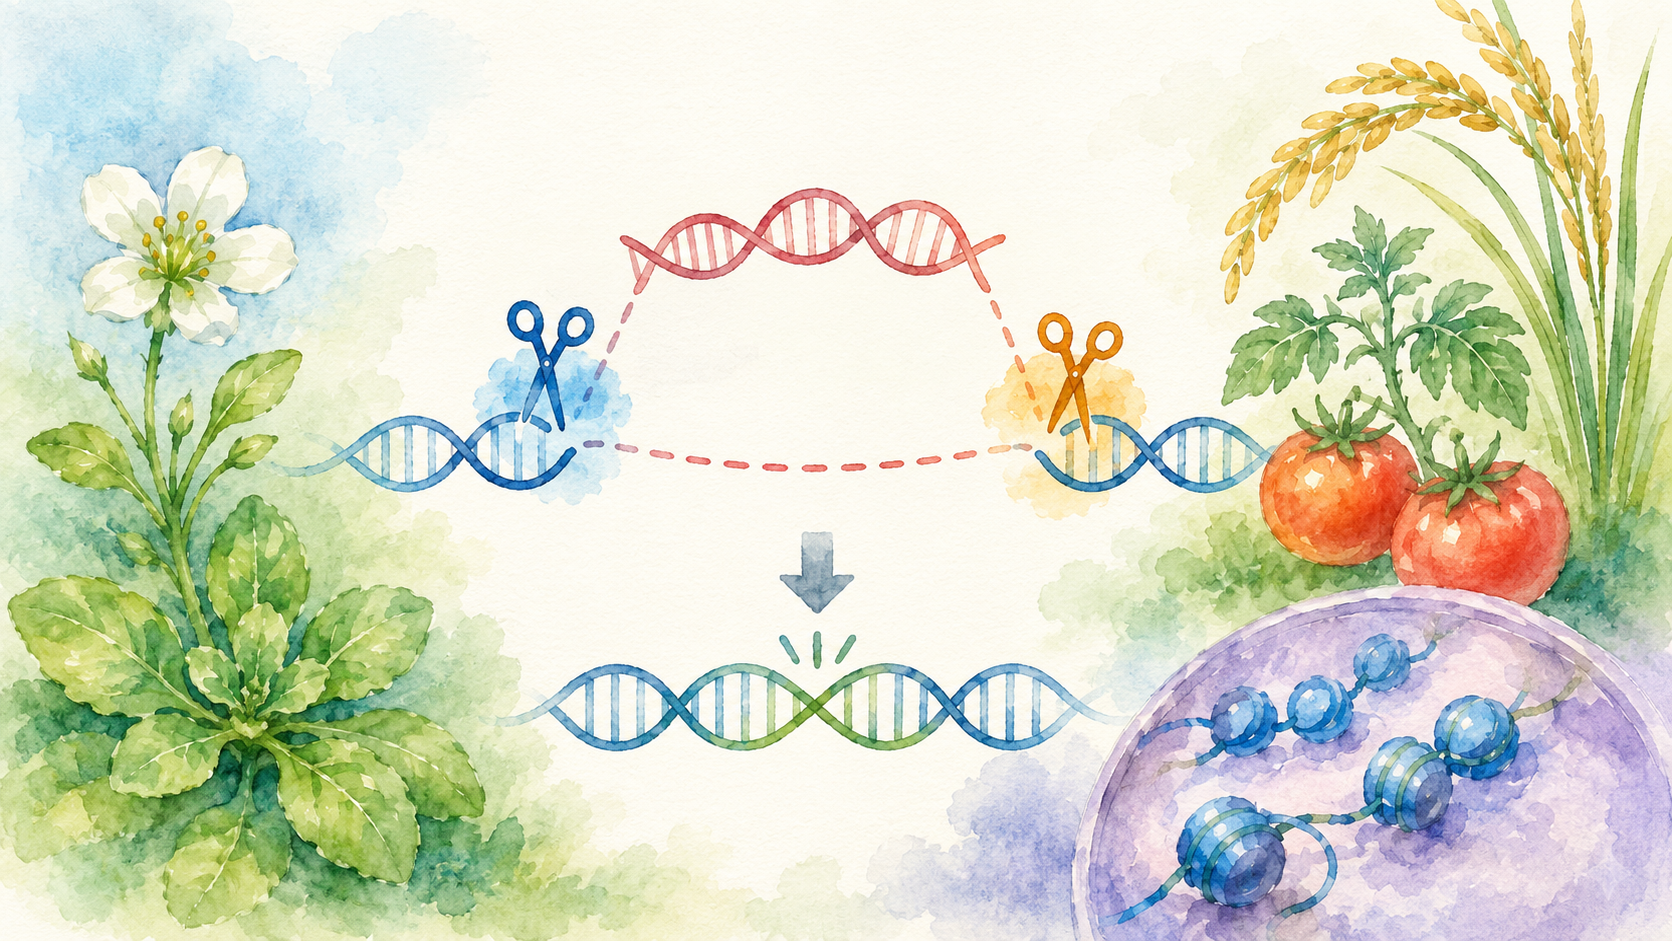
「遺伝子を1か所で切る」から、「ゲノムの一区間を丸ごと切り抜く」へ。
CRISPR/Cas9というと、1本のgRNAで標的を切り、修復の過程で数塩基のindelを入れて遺伝子を壊す使い方がまず思い浮かびます。しかし、消したい領域の左右にgRNAを置けば、2か所の切断点に挟まれたDNAをまとまった区間として欠失させることもできます。
今回は一つの論文を詳しく読むのではなく、2本以上のgRNAでゲノム領域を挟み込み、介在配列を欠失させる植物ゲノム編集について、複数の植物種・研究を横断して見ていきます。
この方法を調べていくと、少し不思議な風景が見えてきます。イネではCRISPR植物研究のかなり早い2014年に、245 kb級の巨大な染色体欠失まで実証されています。ところが別のイネ研究では、240 bpや約1 kbしか離れていない標的でも、狙った介在領域の欠失がほとんど起きませんでした。
100 kbを超えて切れるのに、数百bpが切れないことがある。
ここが今回の記事の中心です。欠失距離は一因ですが、単純に「短いほど簡単」ではありません。左右のgRNAがそれぞれ十分に切れること、同じ細胞で切断のタイミングが重なること、DNA修復が目的のjunctionを作ること、さらにCas9が標的へアクセスできるクロマチン状態まで考える必要があります。
2本のgRNAで「間」を落とす
通常の1本gRNAによる編集では、Cas9が1か所にDNA二本鎖切断(DSB)を入れます。その修復過程で数塩基程度の挿入・欠失が生じ、coding sequenceのframeshiftなどを通じて遺伝子機能を壊します。
dual-gRNA deletionでは、考え方が一段変わります。消したい領域の左側と右側にgRNAを配置し、2か所にDSBを作ります。 その間のDNA断片が失われ、外側のDNA末端同士がNHEJなどで再結合すれば、2つの切断点に挟まれた領域をまとめて欠失できます。
つまり、1本gRNAによる「切断点の周囲に小さな変異を作る」編集と、dual-gRNAによる「ゲノムの一区間そのものを除く」編集は、同じCRISPR/Cas9でも成立条件がかなり違います。
まず研究例を並べると、サイズと効率はきれいに並ばない
代表例を並べると、植物で実証されている欠失サイズの幅は非常に大きいことが分かります。
| 植物・研究 | 主な標的 | 欠失規模・結果 | 重要な点 |
|---|---|---|---|
| イネ:Zhou et al. 2014 | diterpenoid関連遺伝子クラスター | 約115、170、245 kb | 170 kbと245 kbは再分化T0植物でも確認 |
| ダイズ:Cai et al. 2018 | GmFT2a / GmFT5a | 599–1,618 bpで15.6%、4.5 kb超で12.1% | T2でtransgene-free homozygote、開花遅延を確認 |
| Arabidopsis:Durr et al. 2018 | 遺伝子クラスター、非コード調節領域 | 遺伝可能な標的欠失 | gene clusterやregulatory regionまで対象化 |
| イネ:Pathak et al. 2019 | GUS、OsPDS、OsChalk5 | 1,637、987、240 bp | 各切断点は高頻度に変異しても、狙った欠失は稀 |
| イネ:Akama et al. 2020 | OsGAD3 | 122 bp | CaM-binding domain欠失で玄米GABA量が約7倍 |
| トマト:Zhu et al. 2023 | SlyPDS | 約9 kb | 左右2本ずつのdouble-pair strategyで大幅改善 |
| スイートオレンジ:Sopalda et al. 2026 | CsDMR6 | 約5.8 kb | transient系でjunctionをSanger確認 |
この表をサイズ順に眺めても、効率が単純に並ぶわけではありません。むしろ、同じ「2点を切って間を落とす」方法でも、標的ごとに成立しやすさが大きく違うことが見えてきます。
245 kbが切れた一方で、240 bpでも欠失が稀だった
2014年のイネで、すでに245 kb級まで到達していた
Zhouらは、植物CRISPR研究のかなり早い段階でイネの大規模染色体欠失を示しました。protoplastでは約115 kb、170 kb、245 kbの3つの遺伝子クラスターを対象に欠失junctionを検出しています。
特に重要なのは、一過性の細胞実験だけでは終わっていないことです。約245 kbの欠失を持つcallusから再分化したT0植物が得られ、junction sequenceも確認されました。約170 kbの欠失も再分化T0植物で確認されています。
つまり、植物で100 kbを超えるゲノム区間を丸ごと落とせること自体は、CRISPR/Cas9の植物応用が始まった比較的早い時期にすでに示されていました。
ところが別のイネでは、240 bpでも簡単には落ちなかった
Pathakらの2019年の研究は、この話を一気に複雑にします。
GUS、OsPDS、OsChalk5を対象に、それぞれ1,637 bp、987 bp、240 bpの欠失を狙いました。callusでは標的欠失を検出でき、そこから欠失個体を再分化できる例もありました。しかし、再分化個体を広く見ると、狙った介在領域の欠失は稀でした。
その一方で、個々のgRNA切断点には高頻度でindelが入っています。
ここが面白いところです。左側が編集されること、右側が編集されること、そして「左右が協調して間を落とす」ことは同じではありません。
245 kbが成立した研究がある一方で、240 bpでも目的の欠失がほとんど得られない。これだけでも「短いほど高効率」という単純な距離モデルでは足りないことが分かります。
数百bpから数kbでは、遺伝性や表現型までつながった例もある
ダイズではCaiらが、開花関連遺伝子 GmFT2a / GmFT5a をdual-sgRNAで編集しました。GmFT2aでは599~1,618 bpの欠失が5/32個体、15.6%。4.5 kbを超える欠失でも4/33個体、12.1%でした。
さらにT2世代では1,618 bp欠失を持つtransgene-free homozygous mutantを取得し、開花遅延表現型も確認しています。数kb級の欠失を作るだけでなく、遺伝的に固定して表現型へつなげた例です。
ArabidopsisではDurrらが、単一遺伝子の内部だけではなく、遺伝子クラスターや非コード調節領域を含む欠失を作り、遺伝可能なalleleとして回収しました。dual-gRNA deletionは「遺伝子を壊す」だけでなく、複数遺伝子やcis-regulatory regionをゲノム構造ごと調べる手段にもなります。
一方、Akamaらはイネ OsGAD3 のC末端にあるcalmodulin-binding domainを狙い、期待された122 bp欠失を持つ系統を取得しました。この系統では玄米GABA量が野生型の約7倍に増加しています。巨大欠失だけではなく、タンパク質の機能ドメインを選択的に「切り抜く」使い方もできるわけです。
2026年のSopaldaらは、スイートオレンジ CsDMR6 の約5.8 kbを2本のgRNAで挟みました。Agrobacteriumを用いた葉組織のtransient delivery後、予測欠失に対応するPCR産物を取得し、Sanger sequencingでjunctionを確認しています。
ただし、ここは区別が必要です。これはtransient系での分子学的な編集確認であり、5.8 kb欠失を持つ安定な編集スイートオレンジ個体を確立した研究ではありません。
トマト9 kbが見せた「左右を2本ずつにする」効果
Zhuらの2023年の研究は、欠失効率を「距離」だけで考えない方がよいことを、かなり分かりやすく示しています。
トマトの SlyPDS 上で約9 kbを欠失させたとき、通常のdual-sgRNA、つまり左右1本ずつでは、欠失率はtargeted NGSで0.060%、qPCRで0.69%でした。
そこで、左右それぞれに2本ずつ、計4本のsgRNAを配置する double-pair strategy(DPS) を使うと、同じ約9 kb条件でtargeted NGSは13.874%、qPCRは41.99%まで上昇しました。
NGSとqPCRでは測定原理が異なるため、絶対値はかなり違います。したがって「欠失率は42%だった」と単独で扱うのは適切ではありません。
重要なのは、測定法によって絶対値は異なっても、左右1本ずつより、左右に複数の切断候補を持たせた方が欠失が大幅に増えたことです。
これは「9 kbだから難しい」という話だけではありません。むしろ、左右の境界で有効な切断を同じ細胞内に成立させる確率が大きな律速になっている可能性を示しています。
なぜ「短い欠失ほど高効率」ではないのか
欠失距離は無関係ではありません。切断点が遠くなれば、2つのDSBが同一細胞で成立し、外側末端が目的どおり再結合する条件は厳しくなると考えられます。
ただし、植物の実データを見る限り、短いほど必ず高効率になる単純な関係ではありません。
概念的には、目的のdual-gRNA deletionが起きる確率を、次の積として考えると理解しやすくなります。
左側が切れる確率 × 右側が切れる確率 × 同じ細胞で十分近い時間に両方が切れる確率 × 外側DNA末端が再結合する確率
たとえば左側だけが先に切れ、NHEJで修復されたとします。その過程でgRNA認識配列やPAM周辺が変化すると、その場所は同じgRNAでは再切断されにくくなります。
その後に右側が切れても、すでに左側の標的が失われていれば、2つの切断が同時に存在する状態は作れません。結果として、左右それぞれにはindelが入っているのに、狙った区間欠失にはならないことがあります。
Pathakらの結果はまさにこのイメージと整合します。Zhuらが左右の切断候補を冗長化して欠失率を大きく改善したことも、弱い側のgRNAや切断タイミングがボトルネックになり得ることを示唆しています。
gRNA活性は、配列だけでは決まらない
ここからもう一つ重要になるのがクロマチンです。
Cas9が相手にしているのは試験管の中の裸のDNAではありません。核内でヌクレオソームに巻かれ、DNA methylationやhistone modificationを受けた、クロマチン化されたゲノムです。
イネ:同じspacerでもopen/closed chromatinで最大13.4倍
Liuらは2019年、イネ41遺伝子に対する70 sgRNAの編集結果と、DNase I hypersensitive site(DHS)に基づくchromatin accessibilityを比較しました。Cas9による編集は、open chromatinに相当するDHSで高い傾向を示しました。
さらに、配列そのものの影響をできるだけ切り分けるため、同じspacer配列がopen側とclosed側の両方に存在する5組を比較しています。その結果、in vivoでの編集効率はopen側で最大13.4倍高くなりました。
ところが、同じ標的領域をPCR産物として取り出し、クロマチンを除いたDNAをin vitroでCas9 RNPに切らせると、この差はほぼ消えました。
つまり、同じgRNA配列でも、ゲノム上でどのようなクロマチン環境に置かれているかによって切れ方が変わります。
Arabidopsis:同じtarget sequenceでも座位によって最大約250倍
Weissらは2022年、さらに直接的な比較を行いました。Arabidopsisゲノム内に存在する同一のCRISPR target sequenceを利用し、gRNA配列を固定したまま、異なるゲノム座位のchromatin contextを比較しています。
編集効率は座位によって最大約250倍異なりました。低効率座位は、DNA hypermethylation、低いDNA accessibility、H3K9 methylation、H2A.Wなどの抑制的なchromatin特徴と関連しました。一方、高accessibilityや一部のhistone acetylationなどは高効率と関連しました。
さらにDNA methylationを強く低下させる処理では、一部の低効率座位で編集効率が2.1~4.8倍改善しました。
ただし、ここから「open chromatinなら必ず切れる」と考えるのは行き過ぎです。open側にも低効率な標的は存在します。chromatin accessibilityは重要な要因ですが、gRNA配列や局所DNA構造、Cas9発現、細胞状態、修復経路などを含む複数要因の一つです。
ここからは、筆者の実験感覚と仮説です
ここまでは既報の研究結果です。ここから先は、植物ゲノム編集を実際に行ってきた筆者の実験感覚・仮説として分けて書きます。
植物ゲノム編集を行っていると、同じような基準で設計したgRNAでも、異様によく切れるものと、驚くほど切れないものがあります。配列ベースの予測スコアだけでは、その差をきれいに説明できないことがあります。
既報で強く支持されているのは、局所的なchromatin accessibility、ヌクレオソーム、DNA methylation、histone modificationなどがCas9活性へ影響するという点です。
そのうえで個人的には、局所的なopen/closedだけでなく、核内でDNAがどのように置かれ、どのような高次chromatin configurationを取っているかも、Cas9が標的へ到達するしやすさに影響しているのではないか、という感覚があります。
ただし、これは現時点では筆者の仮説です。植物で3D genome structureが個々のgRNA活性を決定することが実証されている、と断定できる段階ではありません。 現状、強い既報があるのは局所accessibility、ヌクレオソーム、DNA methylation、histone modificationなどです。
100 kbを切れる技術なのに、1 kbが切れないことがある
植物のdual-gRNA deletion研究を横断して見ると、最初に感じた矛盾へ戻ってきます。
100 kbを超える領域を欠失できる技術なのに、別の標的では1 kb前後、あるいは240 bpでも目的の欠失がほとんど起きないことがあります。
これは、CRISPR/Cas9が単なる塩基配列だけを見ている技術ではないと考えると理解しやすくなります。
Cas9が実際に相手にしているのは、細胞核の中にあるクロマチン化されたゲノムです。しかもdual-gRNA deletionでは、その条件が1か所ではなく、2か所で、同じ細胞内の適切な時間窓に成立し、最後にDNA修復が目的のjunctionを作る必要があります。
だから「245 kbが切れたのだから、1 kbなら簡単なはず」とは限りません。
設計時に見るべきなのは距離だけではなく、左右それぞれのgRNA活性、切断の同期性、局所クロマチン、修復後の再切断可能性、そして必要であれば左右に複数gRNAを置く冗長性です。
100 kbを切れるのに、1 kbが切れないことがある。
一見矛盾したこの現象こそ、植物CRISPRを「配列を切る技術」ではなく、細胞核の中に存在するゲノムを編集する技術として考える必要があることを、よく表しているのだと思います。
主要文献
- Zhou H. et al. (2014). Large chromosomal deletions and heritable small genetic changes induced by CRISPR/Cas9 in rice. Nucleic Acids Research. DOI: 10.1093/nar/gku806
- Durr J. et al. (2018). Highly efficient heritable targeted deletions of gene clusters and non-coding regulatory regions in Arabidopsis using CRISPR/Cas9. Scientific Reports. DOI: 10.1038/s41598-018-22667-1
- Cai Y. et al. (2018). CRISPR/Cas9-Mediated Deletion of Large Genomic Fragments in Soybean. International Journal of Molecular Sciences. DOI: 10.3390/ijms19123835
- Pathak B. et al. (2019). Dual-targeting by CRISPR/Cas9 leads to efficient point mutagenesis but only rare targeted deletions in the rice genome. 3 Biotech. DOI: 10.1007/s13205-019-1690-z
- Liu G. et al. (2019). Modulating chromatin accessibility by transactivation and targeting proximal dsgRNAs enhances Cas9 editing efficiency in vivo. Genome Biology. DOI: 10.1186/s13059-019-1762-8
- Akama K. et al. (2020). An In Vivo Targeted Deletion of the Calmodulin-Binding Domain from Rice Glutamate Decarboxylase 3 (OsGAD3) Increases γ-Aminobutyric Acid Content in Grains. Rice. DOI: 10.1186/s12284-020-00380-w
- Weiss T. et al. (2022). Epigenetic features drastically impact CRISPR–Cas9 efficacy in plants. Plant Physiology. DOI: 10.1093/plphys/kiac285
- Zhu G. et al. (2023). Efficient large fragment deletion in plants: double pairs of sgRNAs are better than dual sgRNAs. Horticulture Research. DOI: 10.1093/hr/uhad168
- Sopalda S. et al. (2026). Dual-gRNA CRISPR/Cas9 Deletion of CsDMR6 in Sweet Orange Supported by Improved In Vitro Regeneration. Plants. DOI: 10.3390/plants15172664
コメント