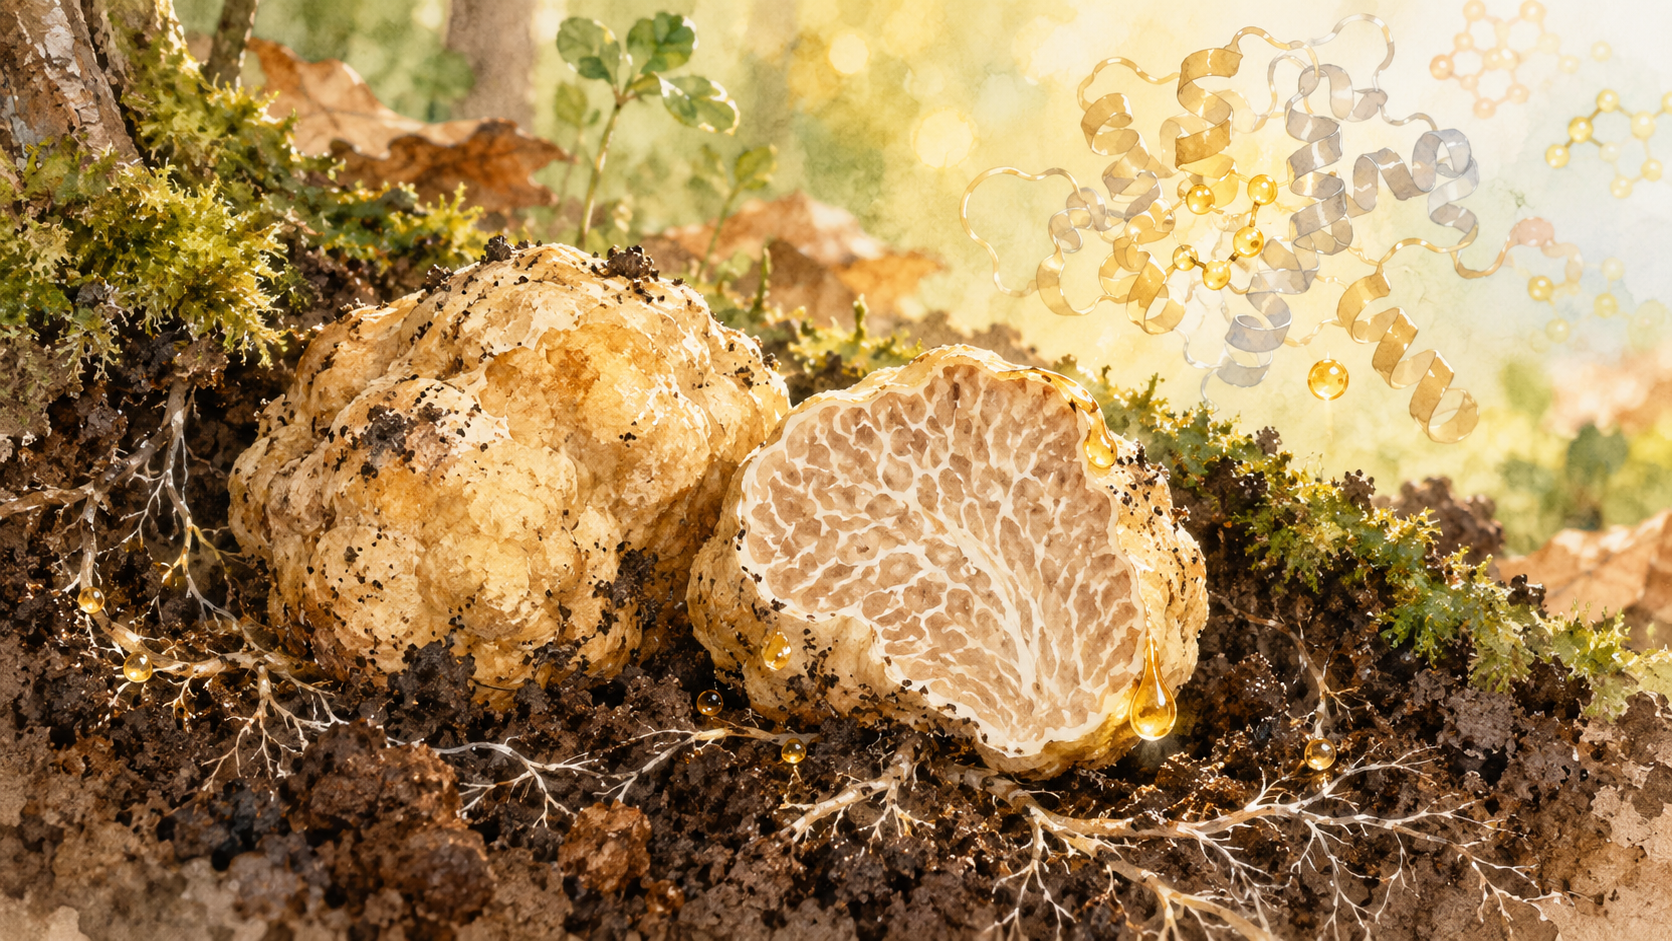
「甘いタンパク質」と聞くと、少し不思議に感じるかもしれません。
私たちが日常的に感じる甘味の代表はショ糖やブドウ糖などの低分子化合物です。しかし自然界には、わずかな量でも強い甘味を感じさせる「甘味タンパク質(sweet protein)」が存在します。代表例は、ソーマチン(thaumatin)、モネリン(monellin)、ブラゼイン(brazzein)など。これらの多くは熱帯植物から発見されてきました。
ところが近年、このリストにかなり異色のメンバーが加わりました。
キノコ、正確には地下に子実体を作る子嚢菌 Mattirolomyces terfezioides 由来の甘味タンパク質です。
2024年にそのタンパク質が分子レベルで同定され、2026年にはヒト甘味受容体の活性化、安全性、NMR構造、さらにX線結晶構造まで相次いで報告されました。
そして2026年9月、ついにその高分解能結晶構造が公開されています。
甘いトリュフ Mattirolomyces terfezioides
Mattirolomyces terfezioides は、子嚢菌門・チャワンタケ目・Pezizaceaeに属する地下生菌です。「Hungarian honey truffle」「Hungarian sweet truffle」などと呼ばれます。
分類学的には Tuber 属ではなく Mattirolomyces 属ですが、地下にトリュフ状の子実体を形成します。
このキノコは以前から非常に甘いことで知られていました。
その甘味成分を突き止めたのが、McFarlandらが2024年に Journal of Agricultural and Food Chemistry に発表した研究です。
研究グループは子実体から甘味活性を追跡し、121アミノ酸からなる新しい甘味タンパク質を同定しました。当初はHoney Truffle Sweetener(HTS)と呼ばれ、その後の論文では活性タンパク質をHoney Truffle Active Component(HT-AC)と呼んでいます。
分子量は約13.4 kDaです。
20 µg/mLで4%ショ糖ほどの甘さ
このタンパク質の甘味はかなり強力です。
2026年の甘味受容体レビューでは、20 µg/mLのHoney Truffle Sweetenerが4%(w/v)ショ糖溶液に相当する甘味を示すと整理されています。
質量濃度だけで比較すれば、約2,000倍です。2026年の安全性論文でも、食品・飲料の配合条件によってHT-ACはショ糖のおよそ500~2,500倍の甘味強度を示すと報告されています。
これはソーマチンやブラゼインなど、既知の高甘味度タンパク質と同じオーダーです。
重要なのは、単に「甘いキノコから甘い抽出物が取れた」という段階では終わっていないことです。
2024年の研究では、HTSをコードする遺伝子を酵母 Komagataella phaffii(旧 Pichia pastoris)に導入し、組換えタンパク質として生産しても甘味が維持されることが示されました。
つまり甘味の主体が、このタンパク質そのものであることを強く支持しています。
2026年、ヒトの甘味受容体を本当に活性化することが確認された
では、なぜタンパク質を口に入れると甘く感じるのでしょうか。
ヒトの主要な甘味受容体は、T1R2とT1R3からなるヘテロ二量体型のクラスC GPCR、T1R2/T1R3です。
2025年にはヒトT1R2/T1R3のcryo-EM構造が報告され、スクラロースやアスパルテームを認識する際の受容体構造が分子レベルで明らかになりました。PDBには9NORなどとして登録されています。
この構造情報を利用して、Voらは2026年1月、HT-ACを含む甘味タンパク質とT1R2/T1R3の相互作用を詳細に解析しました。
ここで重要なのは、HT-ACがヒトT1R2/T1R3を活性化することをcell-based assayで実際に確認した点です。
さらに受容体構造へのドッキング計算から、HT-ACがショ糖や人工甘味料のような低分子と同じポケットに収まるのではなく、受容体表面の別の領域から作用するアロステリックな結合モデルが提示されました。
ただし、ここは区別が必要です。
HT-ACとT1R2/T1R3が結合した複合体そのものをcryo-EMやX線結晶構造解析で観察したわけではありません。
受容体活性化は実験的に確認されていますが、具体的な結合姿勢については現在も構造ベースの計算モデルです。
形は違うのに、なぜ全部「甘い」のか
2026年の研究でもう一つ面白いのが、HT-ACと既知の甘味タンパク質との比較です。
研究対象となったHT-AC、ソーマチン、ブラゼイン、モネリンはいずれも強い甘味を示します。
ところが研究者らによると、これらの間には大きな配列相同性も、共通した全体構造もほとんどありません。
比較的共通して見られる特徴として挙げられたのが、タンパク質表面に存在する正に帯電した領域です。
つまり、「甘味タンパク質」という一つの共通フォールドが存在するわけではない可能性が高いのです。
まったく異なる形のタンパク質が、表面電荷や局所的な立体配置を通じて同じT1R2/T1R3受容体を活性化している。
これは甘味タンパク質研究のかなり面白いところです。
言い換えれば、タンパク質全体の形よりも、受容体と接触する表面の物理化学的性質が「甘さ」を決めている可能性があります。
一方で、わずかなアミノ酸置換や翻訳後修飾によって甘味活性が大きく変化することも知られており、「正電荷を増やせば甘くなる」というほど単純ではありません。2026年の研究でもHT-ACのアイソフォームや修飾体が比較されています。
そして2026年9月、結晶構造まで見えた
HT-ACの溶液NMR構造はPDB 9P6W として2026年4月に公開されました。
121残基、約13.39 kDaの単量体タンパク質として登録されています。
さらに2026年9月15日、Pitkanenらが Acta Crystallographica Section F にHT-ACのX線結晶構造を発表しました。
PDBには 11OS、11OT、11OW、11OX の4構造が登録され、2026年9月23日に公開されています。HEPES、1,4-butanediol、グルコースを含む結晶構造などが取得されました。
いずれも1 Å台の高分解能構造で、NMRで得られた溶液構造ともよく一致しています。
これにより、受容体結合に関与すると考えられている表面残基の側鎖配置を、原子レベルで議論できるようになりました。
なお、グルコースが結合した11OX構造が存在しますが、これを「グルコース結合がHT-ACの甘味を生む」と解釈することはできません。今回の重要点はHT-AC自身の高分解能立体構造が得られたことであり、甘味受容体との直接的な複合体構造はまだ得られていません。
「キノコを育てる」のではなく、酵母で作れる
実用面ではもう一つ重要な特徴があります。
天然の M. terfezioides は栽培が容易ではありませんが、HT-AC自体は K. phaffii を使ったprecision fermentationで生産できます。
2026年の安全性研究では、この発酵生産物をHoney Truffle Sweet Protein(HTSP)として評価しています。
細菌を用いた変異原性試験および哺乳類細胞のmicronucleus assayでは遺伝毒性を示さず、Wistar Hanラットを用いた13週間反復経口投与試験では、HTSP 5,400 mg/kg/day、HT-AC換算で約1,500 mg/kg/dayがNOAELとされました。
ただし、これはヒトで1,500 mg/kg摂取して安全という意味ではありません。
あくまで動物試験で設定されたNOAELであり、ヒトへの食品利用における安全性評価とは分けて考える必要があります。
また、HT-ACに関する主要研究の多くには開発企業MycoTechnologyの研究者が参加しており、2026年の Biochemistry 論文も同社による資金提供を明記しています。今後、独立した研究グループによる検証が増えるかどうかも重要でしょう。
すでに実用化も始まっている
この研究は基礎研究だけでは終わっていません。
MycoTechnologyはHTSPをZukoraのブランド名で米国市場に投入し、2026年には商業規模で供給を開始したと発表しています。
一方、規制上の表現には注意が必要です。
同社は米国で「self-affirmed GRAS」としていますが、FDAに提出されたGRAS Notice GRN 1330――FDA上の物質名は「mycodulcein preparation produced by Komagataella phaffii」――については、2026年9月28日現在、FDAの回答はPendingとなっています。
したがって、「FDAが安全性を承認済み」と書くのは正確ではありません。
甘味タンパク質探索は、まだ終わっていないのかもしれない
これまで強力な甘味タンパク質の探索では、ソーマチン、ブラゼイン、モネリンなど熱帯植物が主役でした。
ところがHT-ACは真菌由来です。
しかも既知の植物甘味タンパク質と配列も立体構造も大きく異なります。それでも同じヒトT1R2/T1R3を活性化します。
これは、「甘味タンパク質になれるアミノ酸配列」が私たちの想像以上に広い可能性を示しています。
菌類のゲノムやトランスクリプトームには、まだ誰も味わったことのない甘味タンパク質が眠っているのかもしれません。
HT-ACの立体構造が決まったことで、今後は単純な配列相同性だけでなく、構造、表面電荷、局所的な残基配置、T1R2/T1R3へのドッキングを組み合わせて、新しい甘味タンパク質を探索することも可能になってきます。
「甘い植物を探す」から、「甘くなり得るタンパク質構造を探索する」へ。
ハニートリュフの研究は、甘味タンパク質探索そのものを変えるきっかけになるかもしれません。
主要論文
McFarland CT. et al. (2024) Discovery, Expression, and In Silico Safety Evaluation of Honey Truffle Sweetener, a Sweet Protein Derived from Mattirolomyces terfezioides and Produced by Heterologous Expression in Komagataella phaffii. Journal of Agricultural and Food Chemistry 72: 19470–19479. DOI: 10.1021/acs.jafc.4c04368
Vo P. et al. (2026) Sweet Protein Allosteric Binding and Activation of the Human T1R2/R3 Sweet Receptor: A Simulation Model Validated by in Vitro Receptor Activation Assay. Biochemistry 65: 399–416. DOI: 10.1021/acs.biochem.5c00622
Potter SM. et al. (2026) Safety evaluation of honey truffle sweet protein produced from Komagataella phaffii. Food and Chemical Toxicology 211: 115987. DOI: 10.1016/j.fct.2026.115987
Pitkanen TT. et al. (2026) Crystal structures of the sweet-tasting protein honey truffle active component from Mattirolomyces terfezioides. Acta Crystallographica Section F. DOI: 10.1107/S2053230X26008745
コメント